This is the Japanese translation of this site.
ケイシー・ラスキン
2025/7/31
昨年、書籍『Evolution 2.0』の著者であり、生命の起源を巡る議論において興味深い思想家であるペリー・マーシャルから連絡がありました。彼は大変親切なことに、デニス・ノーブルと私との友好的な対談を彼が司会することを提案をしてくれました。ノーブル教授をご存じない方のために説明しますと、彼はオックスフォード大学の著名な生物学者・生理学者であり、進化生物学における「Third Way」派の主導的な創始者の一人です。私は長年彼の研究を追っており、過去にそれについて執筆したこともあったため、彼と会話できることに興奮しました。このやり取りは現在、ペリーの『YouTube』チャンネル「Evolution 2.0」に投稿されています。
Privacy Note: On play, Google may track viewers. YouTube's Privacy Policy.
対談を主催してくださったペリー・マーシャル、そして参加してくださったデニス・ノーブルに感謝します。非常に楽しい時間でしたし、皆様にも楽しんでいただけることを願っています!
それでは、この対話の背景をもう少し詳しく見ていきましょう。
「ネオ・ダーウィニズムは死んだ」
ノーブル教授をご存じない方のために述べますと、彼はインテリジェントデザインの支持者ではありませんが、ネオダーウィニズム的進化に対する声高な批判者です。昨年、私は彼があるインタビューで「ネオダーウィニズムは死んだ」とかなり率直に語ったことについて書きました。また昨年、彼は『Nature』誌に「It’s time to admit that genes are not the blueprint for life」と題する記事を書き、「進化の古典的な見解も疑問視されるべきである」と述べ、生命がどのように機能するかについての新しいアイディアを考慮するよう科学者たちに促しました。
「いくつかの細かな点を除けば我々は生命の仕組みを理解している、という振りをするのをやめる時が来た。むしろ、今後数十年でさらなる発見がなされるにつれて、我々の考えを進化させていかなければならない。不確実性の中に留まりつつ、そうした発見のために努めることが、21世紀の生物学にとっての偉大な任務となるであろう。」
彼の記事を取り上げた投稿の中で、私はノーブルが描く生物学の未来像の一部は、目的論 (teleology) やテレオノミー (teleonomy) が果たす役割であることを指摘しました。
「ノーブルは、生物学において『主体性 (agency) と目的 (purpose)』が占める場所もあると考えています。彼は外部の行為者による生命のインテリジェントデザインについて語っているわけではありませんが、生物学の多くに目的があることを認めており、複数の専門家が現在『主体性と目的は、従来の生物学における遺伝子中心の見解で見過ごされてきた、生命を決定づける特徴であると論じている』ことに言及しています。繰り返しますが、これはインテリジェントデザインの現代的理論ではありません。しかし、生命の仕組みに対する私たちの理解に主体性と目的が入り込むことを許容し始めれば、生物学におけるデザインを認識できるようになるための重要な一歩を踏み出していることになります」。
明らかに、ノーブルは革新的で先鋭的な思想家です。
技術的困難
ペリーやデニスとの対話は2024年11月に行われましたが、最初から技術的な困難に見舞われました。
1つには、爆弾低気圧がシアトルを襲った後、私と妻が数日間にわたって停電に見舞われた直後に対話が行われたことです。これは怪我の功名だったかもしれません。自宅にインターネットがないことで、準備のために「Third Way」の進化についてのさまざまな書籍を (時には懐中電灯の光で) 読む機会が得られたからです。これらの読書から着想を得て、ネオダーウィニズム、「Third Way」の進化、そしてインテリジェントデザインの類似点と相違点を比較する大まかなベン図を作成し、対話中にデニス、ペリー氏、私の3人で議論しました。
2つ目の技術的トラブルは、どういうわけか映像が録画されていなかったことです。幸いなことに音声は問題なく出力されていたため、ペリーは対話のオーディオ版を投稿し、視聴者の参照用に話し手の画像や前述のベン図を示す映像を重ねてくれました。
生物学におけるプログラミング
対話について最後に注記が1つあります。細胞が「プログラミング」を含んでいるかどうかという質問に対し、私が上手く対処できなかった点がありました。私の言葉は正確には、それらが必ずしも「プログラミング」を含んでいるわけではないというものでしたが、「人間のソフトウェアとまったく同じようなプログラミングを含んでいるわけではない」と言うべきでした。ここで文脈が鍵になります。なぜならそのセクションでは、コンピュータープログラミングに見られるような「条件分岐ロジック」がDNAに含まれているかどうかを議論していたからです。DNA自体に明示的な「if-then」プログラミング文が見つからないのは事実です。私が言いたかったのはそれだけです。ただし、DNAが紛れもなくプログラミングを含んでいるのも事実です。コンピューターのハードウェアがソフトウェア内の命令を読み取り、解釈し、実行するのと良く似た方法で、細胞機械 (例: リボソーム) によって読み取られ、解釈され、実行される命令や指令が含まれているのです。これは、DNAがコンピュータープログラムと非常に類似した特性を持っていることを示しています。
私はプロのコンピュータープログラマーではありませんが、博士課程の間にPythonコードを3万行以上書いた経験などから、プログラミングについては少々知っています。DNA内に明示的な「if-then」文が見つからないからといって、DNAにプログラミングがないことや、生物学に条件分岐ロジックが存在しないことを意味しません。細胞内で実際に起きているのは、DNA内のプログラミングがタンパク質やRNA分子を産出する細胞機械を構築するためのパーツをエンコードし、DNAのプログラミングによるこれらの分子産物が細胞内に出て行って化学ベースの論理演算を実行する、ということで、これは多くの場合、条件分岐ロジックに他なりません。多くの例を議論することができますが、有名な「ラクトースオペロン」を考慮してみましょう。
オペロンとは、タンパク質符号化領域を隔てる終止コドンを持つ単一のRNA転写物を生産するために、まとめて発現する遺伝子群のことです。ラクトースオペロンは、多くの細菌種がラクトース(乳糖)を分解して食料源として利用するのを助ける酵素の生産を制御しています。大腸菌 (E. coli) における大まかな仕組みは以下の通りです。
グルコース (ブドウ糖) は大腸菌が好む糖です。したがって、この細菌は2つの論理的条件が満たされた場合にのみラクトースオペロンの利用をオンにしようとします。(1) グルコースが枯渇していること、(2) ラクトースが存在すること、の2点です。
グルコースが存在する場合、大腸菌はラクトースを使用する必要がありません。しかし、グルコースが枯渇すると連鎖反応が始まり、最終的にRNAポリメラーゼが細菌染色体上のプロモーター配列に結合するよう動員されます。
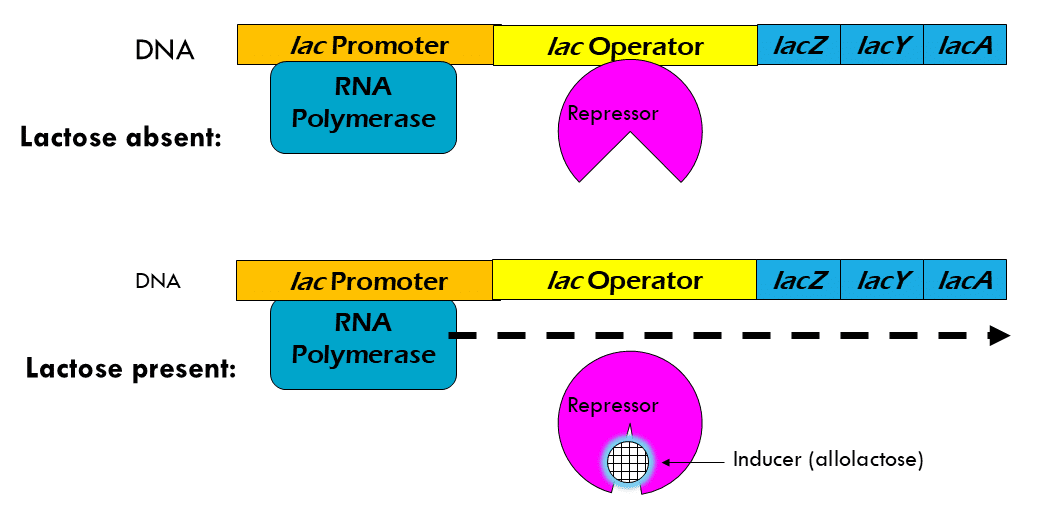
そしてラクトースが欠如している場合、細菌はラクトースを代謝する酵素 (lacZ、lacY、lacA) を生成する遺伝子を転写・翻訳することで資源を無駄にしたくありません。そのため、ラクトースが欠如しているときは、抑制因子 (リプレッサー) 分子が細菌染色体のちょうど適切な場所に結合し、RNAポリメラーゼがそれらの遺伝子を転写するのを妨げます。しかし、ラクトースが存在するときは、リプレッサーに結合する誘導物質 (アロラクトース) の生産が可能になり、リプレッサーが染色体から解放されて転写が起こる道が開かれます。
両方の条件が満たされたとき——つまりグルコースが枯渇し、ラクトースが存在するとき——ラクトースを代謝するための遺伝子が転写され、ラクトースが細胞内の栄養源として利用できるようになります。
これが条件分岐ロジックであり、仮にこれを擬似コードで表現すると、次のようになるかもしれません。
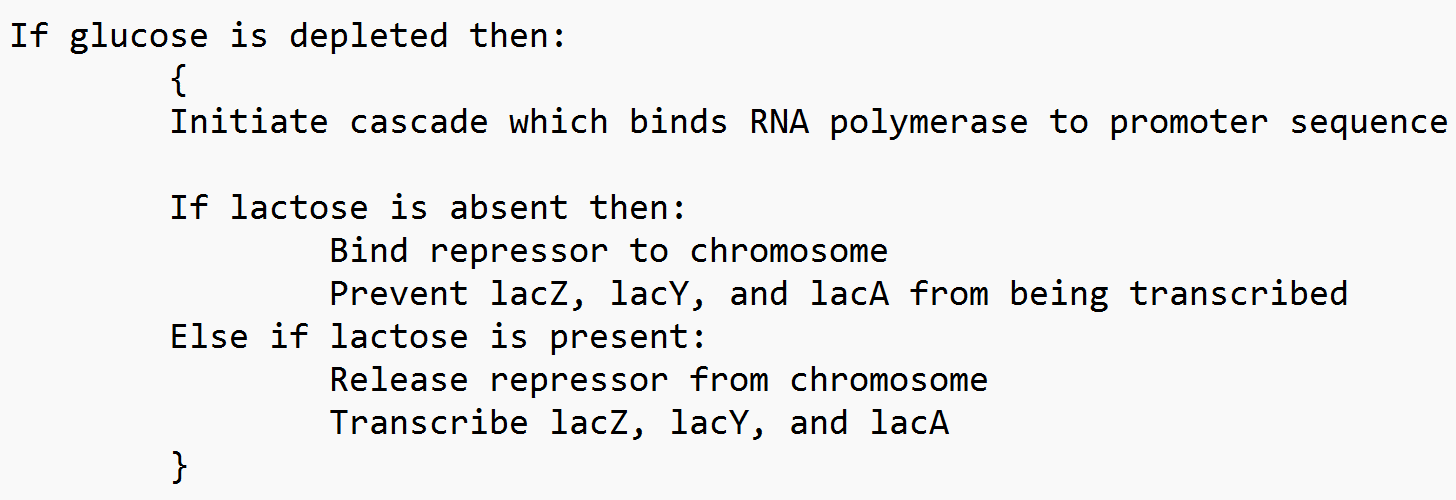
これは本質的に、生物学における条件分岐ロジックに基づくプログラミングの一形態を表しています。しかし、明確でないと感じる方のために、条件分岐ロジックのラクトース部分がどのように機能するかについての、手作りの大まかな図解表現を以下に示します (注: この画像はグルコースがすでに枯渇しており、RNAポリメラーゼがプロモーターに結合していることを前提としています)。
これは、細胞が化学駆動の条件分岐ロジックを使用して環境からの信号に応答する多数の例の1つです。これらの条件分岐ロジック回路はアルゴリズム的であり、DNA分子自体のヌクレオチド配列の「内部」に直接見つかるわけではないものの、コンピュータープログラミングのロジックと非常に良く似ています。ただし、DNAにはこのロジック回路が機能するために必要な分子パーツを構築するためのプログラミングが含まれており、それらのパーツが細胞内に出て行って仕事を行います。つまり、化学を使用して条件分岐ロジックを実行し、細胞が受け取る入力に対してアルゴリズム的に応答することを可能にするのです。
実際、ジョナサン・マクラッチーは最近、「Recurring Design Logic in Operon Regulation」およびそれに追記する「Recurring Design Logic in Attenuation Mechanisms」という非常に素晴らしい記事を書きました。ジョナサンによると、これらは条件分岐ロジック回路を表しているだけでなく、実質的に同一の形態を持つ条件分岐論理制御回路が、多様な生物学的システム全体の遺伝子調節において繰り返し再利用されていることが判明しているとのことです。もちろん、システムが異なれば、展開される論理回路を実行する酵素や分子は通常は異なります。しかし、条件分岐論理回路の基本形態は何度も繰り返されます。つまり、私たちにあるのは条件分岐論理制御回路、およびこれらのアルゴリズム的制御回路の論理の度重なる再利用の両方なのです。興味深いことではありませんか?
ビル・ゲイツが「DNAはコンピュータープログラムのようなものだが、これまで作成されたどのソフトウェアよりも遥かに高度である」と語ったのは全く正しかったのです。ゲイツ氏が言わなかったのは、生きている細胞全体にはDNAを超えたプログラミングのような条件分岐論理も機能しているということです。そして、ここに私が示したいことがあります。この条件分岐プログラミング論理は、必ずしもDNA配列そのものの「内部」にあるとは限らず、むしろDNA内のプログラミングによってエンコードされた構成要素自体によって頻繁に実行されているということです。これらの構成要素が細胞内に出て行き、条件分岐ロジックを実行して遺伝子調節や他の多くのシステムを制御しているのです。
そして、私たちはこれをどのように説明すべきでしょうか?これは単に、生物学全体で同様の条件分岐論理制御回路が繰り返し収斂進化しただけなのでしょうか?私たちはこの問いを立てなければなりません。私たちの経験において、条件分岐論理回路を生成するような原因は何でしょうか、そしてそれらのアルゴリズム的プログラムを異なるシステムで何度も再利用するような原因は何でしょうか?コンピュータープログラミングの分野が私たちに教えてくれるのは、それが盲目の進化ではないということです。すなわち、それは知性なのです。
